W jaki sposób poruszają się komórki? Dotychczas istniały sprzeczne teorie dotyczące szczegółów tego zjawiska. Teraz naukowcy zbadali złożone interakcje molekularne zachodzące podczas ruchu komórek i przedstawili nowe ustalenia dotyczące ruchu komórek oraz potencjalnych metod terapeutycznych.
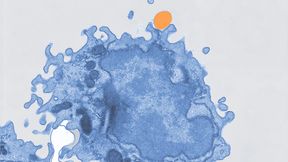
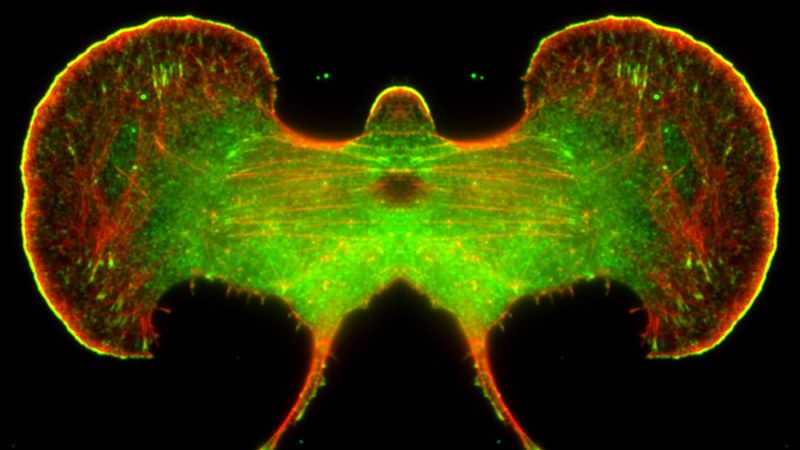
Wędrująca komórka czerniaka z niedoborem profiliny 1 (odbicie lustrzane) po wybarwieniu włókien aktynowych (na czerwono) oraz polimerazy aktynowej VASP (na zielono).
(Zdjęcie: dr Yubo Tang)
Zdolność komórek do zmiany położenia ma kluczowe znaczenie dla wielu procesów zachodzących w organizmie: na przykład komórki odpornościowe muszą dotrzeć do miejsca działania, podczas gojenia się ran komórki przemieszczają się do uszkodzonej tkanki, a podobne procesy odgrywają istotną rolę również w rozwoju aksonów, czyli długich wyrostków komórek nerwowych. Jednocześnie komórki nowotworowe mogą wykorzystywać swoją ruchliwość do wnikania w otaczające tkanki i rozprzestrzeniania się w organizmie.
Zespół z grupy badawczej „Molekularna biologia komórkowa” prof. Klemensa Rottnera w Centrum Badań nad Infekcjami im. Helmholtza (HZI) wyjaśnił kluczowe interakcje molekularne, które regulują tworzenie się sieci aktynowych na przedniej krawędzi komórek wędrujących. Wyniki tych badań stanowią ważną podstawę do dokładniejszego zbadania w przyszłości, w jaki sposób ruch komórek zmienia się również w procesach chorobowych i czy można na niego celowo wpływać.
Kluczową rolę w przemieszczaniu się komórek odgrywają często lamellipodia: płaskie, szerokie wyrostki komórkowe na przedniej krawędzi komórek przemieszczających się. W lamellipodiach komórka tworzy na swoim czole gęstą, rozgałęzioną sieć włókien aktynowych. W miarę wzrostu tej sieci wypycha ona błonę komórkową do przodu, przyczyniając się w ten sposób do ruchu komórki. Ale w jaki sposób dokładnie odbywa się molekularna regulacja tych lamellipodiów? „Dotychczasowe wyniki badań dotyczące roli profiliny w tej interakcji były sprzeczne. Nasze wyniki wnoszą teraz znacznie więcej jasności” – mówi kierownik badania, Rottner.
Wykorzystując metodę edycji genomu CRISPR/Cas9, naukowcy celowo wyłączyli w hodowlach komórkowych poszczególne geny – czasami nawet kilka jednocześnie. Następnie zbadali, jak wpłynęło to na budowę i ruch lamellipodiów, a także na rozmieszczenie pozostałych białek biorących udział w tym procesie. W ten sposób udało im się krok po kroku rozszyfrować funkcjonalne powiązania między różnymi składnikami. Zespół skupił się przede wszystkim na roli następujących czterech składników:
białko profilina (Pfn) wiążące monomery aktyny : Profilina wiąże pojedyncze cząsteczki aktyny i utrzymuje je w postaci umożliwiającej wykorzystanie ich do budowy rosnących włókien aktynowych.
kompleks Arp2/3: Ten kompleks białkowy inicjuje tworzenie nowych włókienek aktynowych, tworząc przy tym rozgałęzione sieci aktynowe charakterystyczne dla lamellipodiów.
heterodimeryczne białko Capping-Protein (CP): Ten kompleks, składający się z dwóch podjednostek białkowych, osadza się na szybko rosnących końcach włókien aktynowych, w pewnym sensie je zamykając i ograniczając w ten sposób długość, do jakiej poszczególne włókna mogą dalej rosnąć.
polimerazy z rodziny Ena/VASP : Białka te sprzyjają wzrostowi włókien aktynowych, wspomagając przyłączanie kolejnych cząsteczek aktyny do ich rosnących końców, podobnie jak forminy, kolejna klasa polimeraz.
„Udało nam się lepiej zrozumieć, w jaki sposób te składniki oddziałują na siebie i jak w ten sposób regulują ruch” – mówi dr Yubo Tang, pierwszy autor badania. Ta interakcja wygląda między innymi następująco: profilina hamuje działanie polimeraz Ena/VASP, jednocześnie jednak wspomaga aktywność kompleksu Arp2/3. Z kolei Ena/VASP i białko cappingowe również działają jako antagoniści.
Szczególnie pouczające okazały się połączone wyłączenia genów: nawet przy braku Ena/VASP zachował się stymulujący wpływ profiliny na kompleks Arp2/3. W przypadku białka Capping Protein sytuacja wyglądała inaczej: w przypadku braku Ena/VASP znikał efekt, jaki utrata profiliny zwykle wywiera na CP. Eksperymenty te pokazują zatem, że profilina oddziałuje zarówno na Arp2/3, jak i na CP poprzez różne mechanizmy.
Wzajemny wpływ na ruch komórek
Podsumowując, wyniki te wskazują, że profilin pełni rolę kluczowego regulatora w tworzeniu sieci aktynowych zależnych od kompleksu Arp2/3. W ten sposób odkrycia te wyjaśniają dotychczasowe sprzeczności: wcześniejsze badania sugerowały, że profilina kieruje monomery aktyny przede wszystkim do struktur zależnych od formin lub Ena/VASP, a tym samym z dala od Arp2/3 – inne badania doprowadziły natomiast do przeciwnego wniosku. „Teraz możemy rozwiać tę niepewność. Nasze badania bowiem jednoznacznie pokazują, że profilina wspomaga aktywność Arp2/3, a także wyjaśniają, w jaki sposób” – mówi kierownik badań Rottner.
Modelowanie matematyczne danych eksperymentalnych, przeprowadzone we współpracy z prof. Martinem Falcke z Centrum im. Maxa Delbrücka w Berlinie, nie tylko odtworzyło wyniki eksperymentów, ale również sugerowało, że białka Ena/VASP i CP konkurują o wspólne miejsca rekrutacji na obrzeżach lamellipodiów.
Wgląd w ruch czoła komórkowego
W ten sposób praca ta dostarcza kluczowych spostrzeżeń dotyczących logiki molekularnej, zgodnie z którą powstają rozgałęzione sieci aktynowe podczas przesuwania błony komórkowej i generowania siły. „Obecnie znacznie lepiej rozumiemy, w jaki sposób różne elementy molekularne współdziałają na przedniej krawędzi komórki” – mówi Rottner. „Ta wiedza na temat mechanizmów stanowi ważną podstawę do przyszłych badań nad tym, co przebiega inaczej w przypadku patologicznych zmian w ruchu komórek – na przykład w komórkach nowotworowych lub po infekcjach – oraz w jakich miejscach można w przyszłości celowo wpływać na takie procesy”.
Stan na dzień: 20.11.2020 r.
Jest dla nas sprawą oczywistą, że w sposób odpowiedzialny obchodzimy się z danymi osobowymi użytkowników. Jeśli gromadzimy dane osobowe, przetwarzamy je zgodnie z obowiązującymi przepisami o ochronie danych. Szczegółowe informacje można znaleźć tutaj: Polityka prywatności.
Zgoda na wykorzystanie danych do celów reklamowych
Wyrażam zgodę na wykorzystywanie przez spółkę Vogel Communications Group GmbH & Co. KG, Max-Planck-Str. 7-9, 97082 Würzburg, Niemcy, oraz przez wszystkie spółki z nią powiązane w rozumieniu §§ 15 i nast. niemieckiej ustawy o spółkach akcyjnych AktG (dalej: Vogel Communications Group) mojego adresu e-mail do przesyłania mi newsletterów redakcyjnych. Lista spółek stowarzyszonych znajduje się tutaj.
Treść newslettera obejmuje produkty i usługi wszystkich wyżej wymienionych spółek, w tym na przykład czasopisma branżowe i książki specjalistyczne, wydarzenia i targi branżowe, a także produkty i usługi związane z wydarzeniami, oferty i usługi mediów drukowanych i wirtualnych, takie jak inne newslettery informacyjne, konkursy, kampanie leadowe, badania rynku online i offline, specjalistyczne portale internetowe i oferty e-learningowe. Jeśli pobrany został również mój osobisty numer telefonu, może być on wykorzystany do składania ofert dotyczących wymienionych wyżej produktów i usług wyżej wymienionych spółek oraz do badań rynkowych.
Moja zgoda obejmuje również przetwarzanie mojego adresu e-mail i numeru telefonu w celu porównania danych w celach marketingowych z wybranymi partnerami reklamowymi, takimi jak np. LinkedIn, Google i Meta. W tym celu Vogel Communications Group może przekazać wskazane dane w postaci zahashowanej partnerom reklamowym, a partnerzy ci mogą następnie wykorzystywać je w celu ustalenia, czy posiadam również konto w odpowiednich serwisach tych partnerów reklamowych. Grupa Vogel Communications wykorzystuje tę funkcję do celów retargetingu (upselling, cross-selling i budowanie lojalności klientów), tworzenia tzw. grup odbiorców podobnych (Lookalike Audiences) w celu pozyskiwania nowych klientów oraz jako podstawę do wykluczania odbiorców z bieżących kampanii reklamowych. Więcej informacji można znaleźć w sekcji „Porównanie danych w celach marketingowych” w polityce prywatności.
Jeśli otworzę na stronach internetowych chronione treści umieszczone na portalach Grupy Vogel Communications, w tym jej spółek stowarzyszonych w rozumieniu §§ 15 i nast. niemieckiej ustawy o spółkach akcyjnych AktG, muszę zarejestrować się, podając dodatkowe dane, aby uzyskać dostęp do tych treści. W zamian za bezpłatny dostęp do treści redakcyjnych, moje dane mogą być wykorzystywane zgodnie z niniejszą zgodą do tutaj określonych celów. Nie dotyczy to porównywania danych w celach marketingowych.
Prawo do wycofania zgody
Jestem świadomy(a), że w przyszłości mogę wycofać zgodę w dowolnym momencie. Wycofanie przeze mnie zgody nie ma wpływu na zgodność z prawem przetwarzania, którego dokonano na podstawie mojej zgody do momentu jej wycofania. Aby wycofać zgodę, mogę skorzystać z formularza kontaktowego dostępnego pod adresem https://contact.vogel.de. Jeśli nie chcę już otrzymywać subskrybowanych przeze mnie newsletterów, mogę zrezygnować z subskrypcji naciskając w link znajdujący się na końcu newslettera. Więcej informacji na temat mojego prawa do wycofania zgody, a także konsekwencji wycofania zgody znajduje się tutaj: Polityka prywatności, sekcja Newslettery redakcyjne.
Ponadto pozostaje otwarta ważna kwestia, o które struktury molekularne konkurują Ena/VASP i białko cappingowe w celu rekrutacji na front komórkowy. Stanowi to jeden z wielu ważnych kierunków przyszłych badań zespołu Rottnera.
Oryginalna publikacja: Yubo Tang, Matthias Schaks, Xinqi Jiang, Marius Karger, Magdalena Mietkowska, Julian Kaltenhäuser, Jonas Scholz, Ruth Benavente-Naranjo, Sijian Hu, Sarah Körber, Zhilun Li, Christopher Lambert, Jessica L. Henty-Ridilla, Theresia E. B. Stradal, Roger Karlsson, Peter Bieling, Jan Faix, Martin Falcke i Klemens Rottner: Profilina sprzyja wysuwaniu się lamellipodiów poprzez regulację antagonistycznej aktywności białka cappingowego i VASP, Nature Communications, tom 17, numer artykułu: 9887 (2026) DOI: 10.1038/s41467-026-77694-8